

Pedro María Aso
Dos protozoarios del género Trypanosoma ocupan nuestro interés en Venezuela con relación a la tripanosomosis equina: el Trypanosoma evansi, causante de la derrengadera y el Trypanosoma equiperdum responsable de la enfermedad conocida con el nombre internacional de Durina. El primer tripanosoma patógeno que se descubrió fue T. evansi por Evans en 1880 en sangre de caballos y camellos que sufrían una enfermedad endémica conocida en la India como Surra (Hoare, 1972). Se cree que fue introducido al continente americano después del siglo XVI a través de caballos traídos por los conquistadores españoles (Hoare, 1972), aunque un trabajo más reciente sugiere su introducción en nuestro país hacia los años 1815-1820 (Canelón y Meléndez, 2003).
En Venezuela fue descubierto por Rangel (1905), en sangre de caballos afectados por esta enfermedad de carácter epizoótico, causante de grandes pérdidas en los llanos venezolanos, se bautizó en ese entonces como Trypanosoma venezuelense. Su hábitat se caracteriza por zonas húmedas, con amplias regiones anegadas enmarcadas entre grandes ríos, topografía plana y con una gran variedad de fauna silvestre, entre las que se señala el chigüire, que comparte el hábitat con especies domésticas como bovinos, equinos y búfalos (Reverón, 1992, Arias y col., 1997, García y col., 2000).
A pesar que en ciertos casos puede observarse pleomorfismo en algunos aislados (formas regordetas ó «stumpy» y formas intermedias), T. evansi es considerada como especie monomórfica tripomastigote con una longitud entre 14-33 μm y 1,5-2,2 μm. Caballos infectados experimentalmente con un aislado venezolano de T. evansi muestran un curso ondulante de la parasitemia con varias ondas o poblaciones de parásitos, con fluctuaciones de la temperatura corporal concomitantes (Fig. 1). Los signos clínicos de esta tripanosomosis se caracterizan por fiebre y anemia (Fig. 2), seguida de emaciación, edema, caquexia y aumento del tamaño de los nódulos linfáticos y del bazo (Fig.3).Posteriormente aparecen síntomas neurológicos característicos de la enfermedad (García, 1988).
La especie del hospedador, su edad y la condición fisiológica determinan el nivel de susceptibilidad a la infección y la manifestación clínica de la enfermedad. Así por ejemplo, se demostró que la cepa de ratones NMRI de un grupo de seis cepas (Fig. 4), era la más susceptible a la infección por un aislado de T. evansi (TeAp-Mantecal), obtenido a partir de un equino del Estado Apure (Perrone, 2003; Perrone y col., 2006). El grado de infección en el hospedador, el tipo de infección (aguda o crónica) y el nivel de parasitemia en algún individuo, probablemente sean los factores que influencien la transmisión por insectos vectores. La influencia de estaciones climáticas afecta la densidad de la población de los insectos vectores y por lo tanto, la oportunidad para la transmisión.
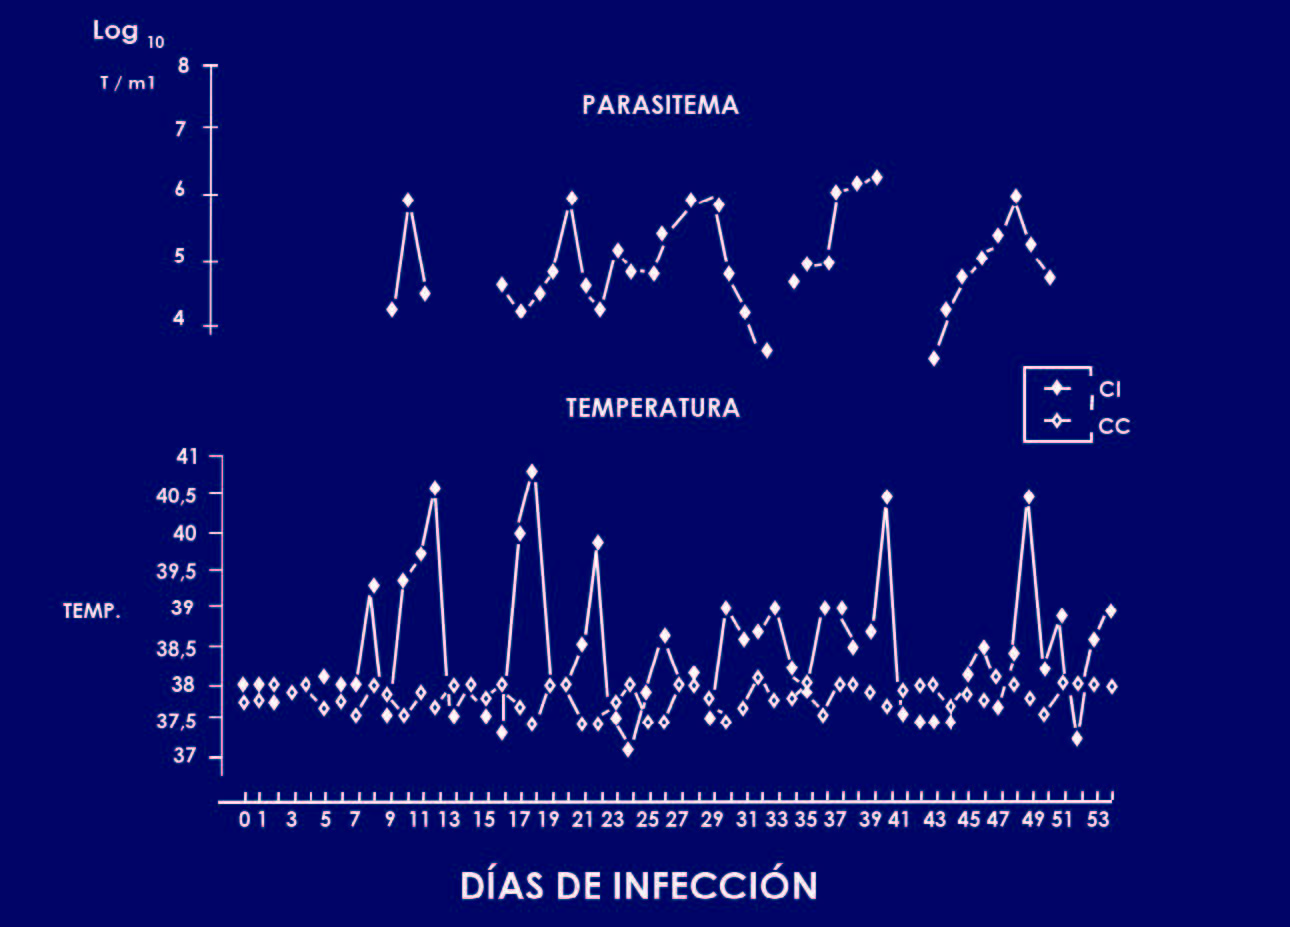
Figura 1. Variación de parasitemia y temperatura corporal de un caballo infectado experimentalmente con T. evansi.
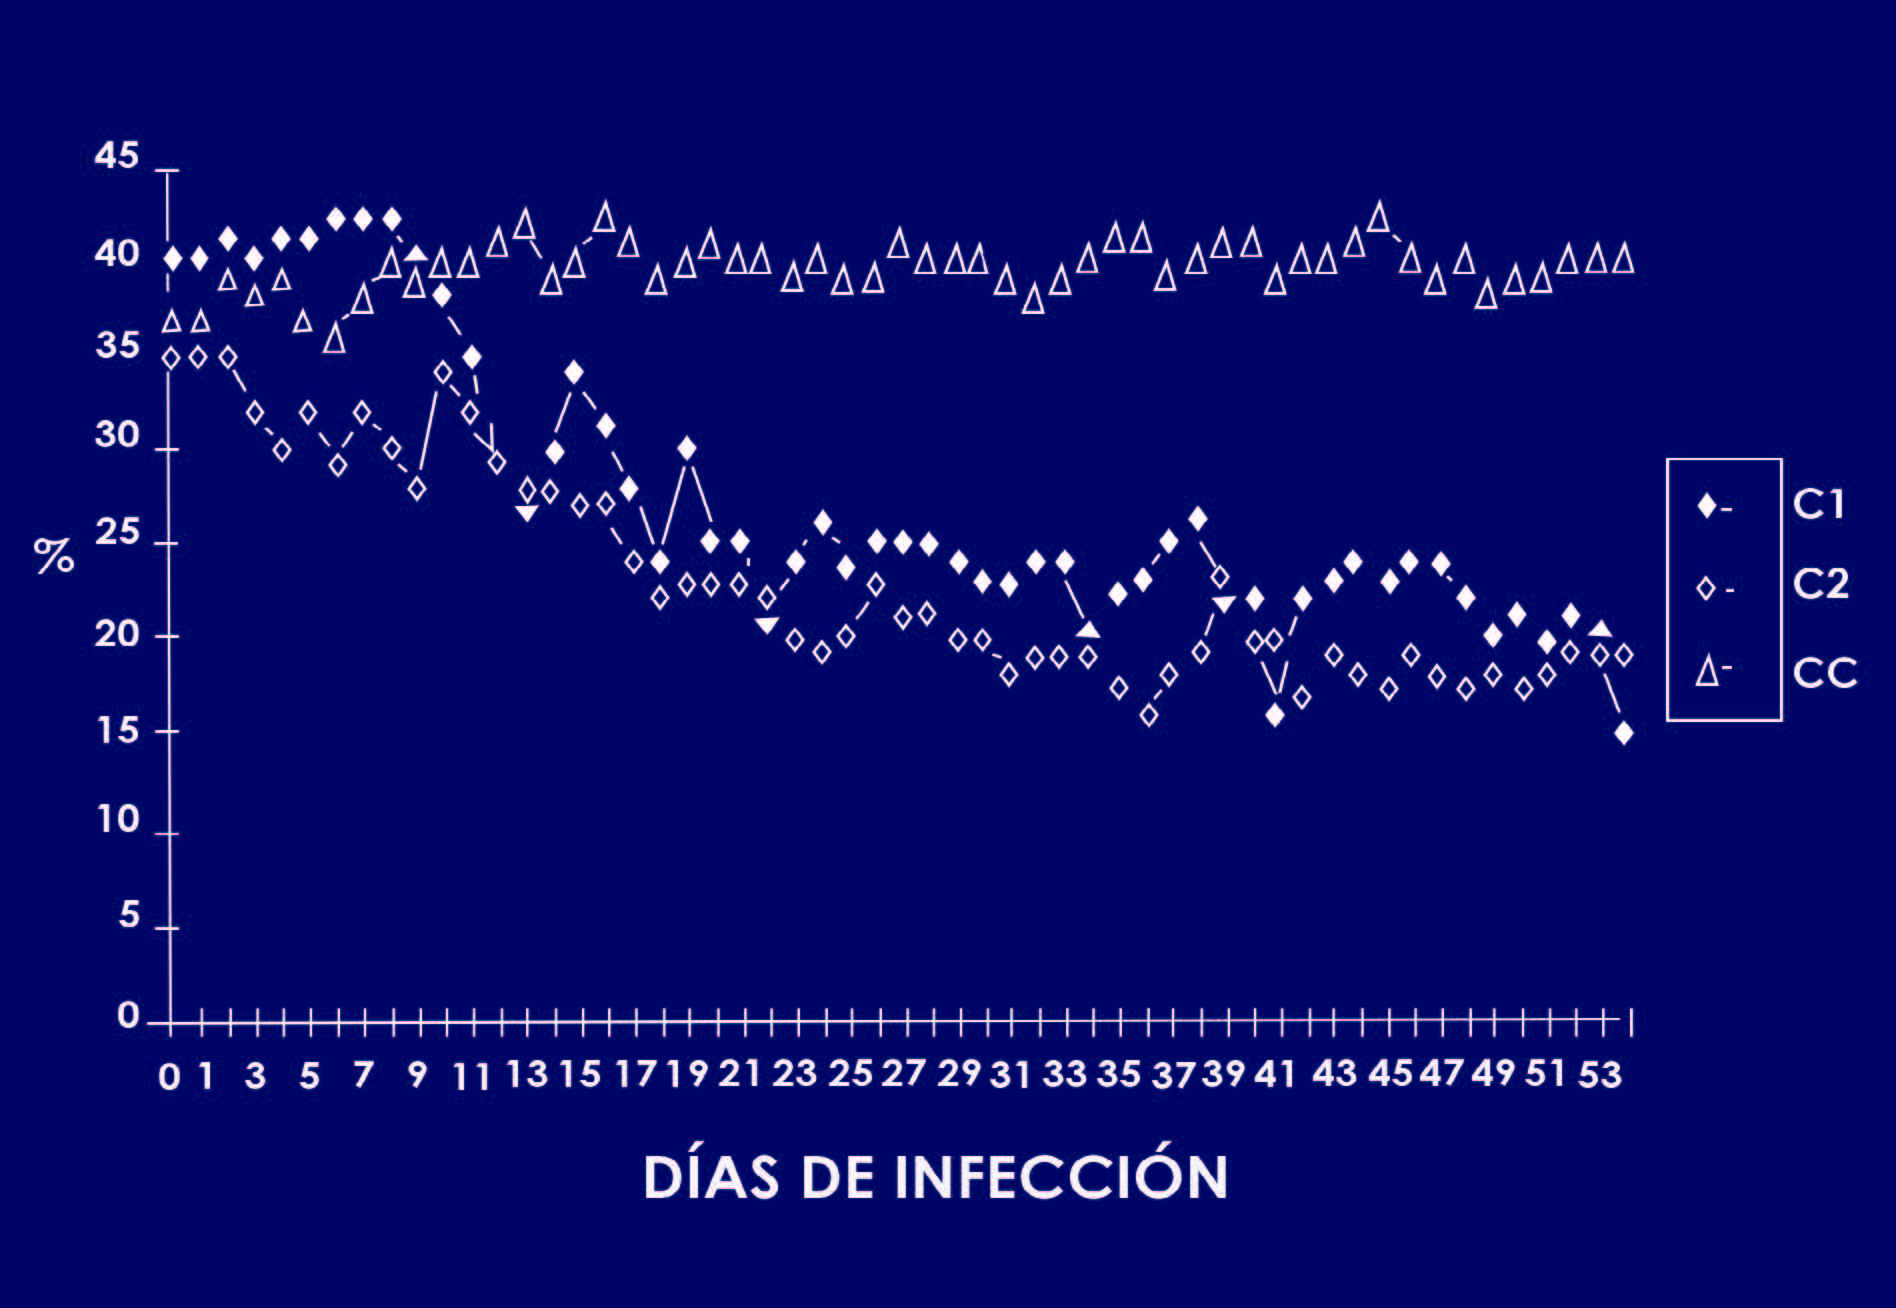
\Figura 2. Variaciones del hematocrito de dos caballos infectados experimentalmente (C1 y C2) con un aislado venezolano de T. evansi.
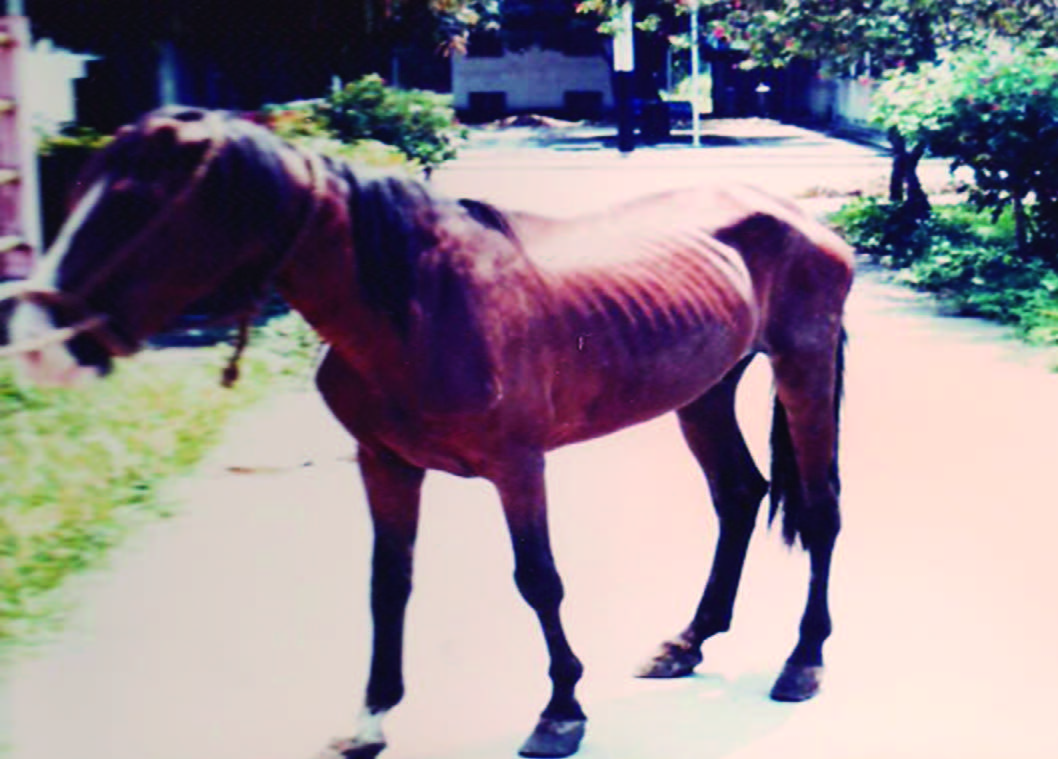
Figura 3. Caballo infectado experimentalmente con un aislado venezolano de T. evansi. Observe grado de enflaquecimiento del animal.
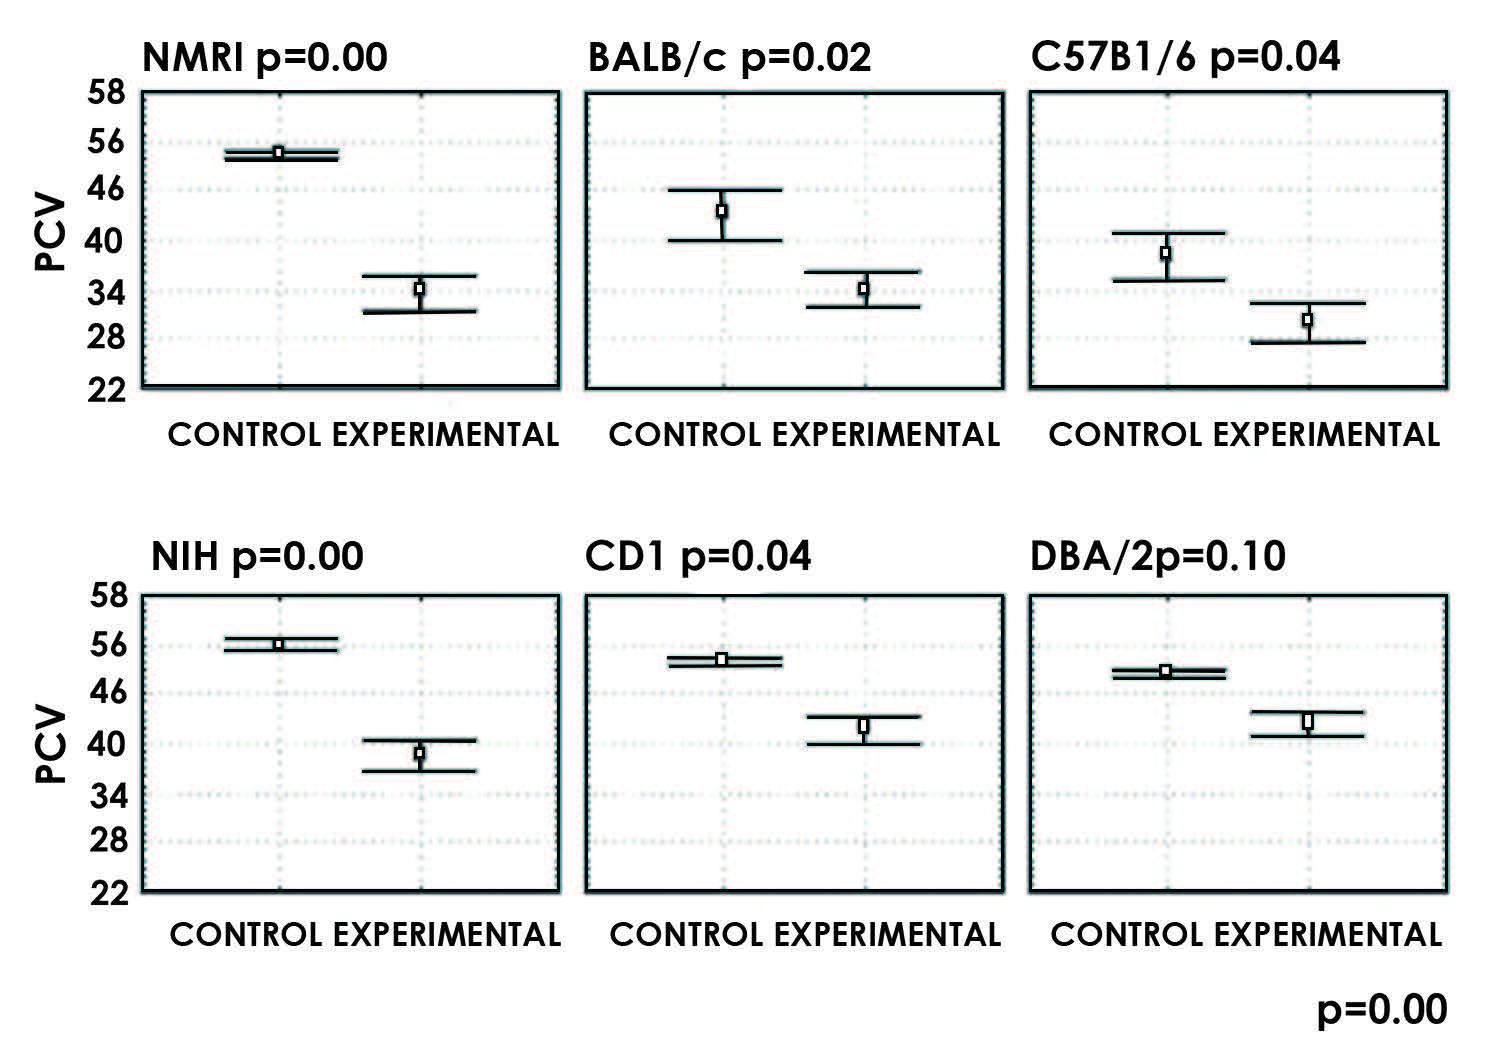
Figura 4. Valores comparativos (media y desviación estándar) de hematocrito (PCV) de seis de cepas de grupos de ratones infectados con T. evansi Mantecal.
Control = ratones no infectados. Experimental = ratones infectados.
Otros factores como la presencia de reservorios, la inclusión de animales infectados o la introducción de animales susceptibles pudieran actuar como elementos repotenciadores de la prevalencia de la enfermedad. T. evansi carece de genes necesarios para el desarrollo mitocondrial (Borst y col., 1987), por lo tanto es incapaz de crecer y diferenciarse en el insecto vector, por lo que la transmisión se realiza de manera mecánica por insectos succionadores de sangre. Entre ellos la mosca del caballo (Tabanus spp), la mosca brava de los establos (Stomoxis spp) y la mosca de la paleta Haematobia irritans.
Las poblaciones de tripanosomas pueden variar en términos de patogenicidad y sensibilidad a drogas. Diferentes estudios de virulencia y patogenicidad se han realizado con aislados de T. evansi de búfalos (Verdillo y col., 2012, Mekata y col., 2013). También se encontraron diferencias en la virulencia de aislados de T. evansi dependiendo del hospedador a partir del cual se obtuvo el parásito en la zona de Pantanal en Brasil (Queiros y col., 2000). En Venezuela se destaca el trabajo de Arcay y col (1980), quienes reportan que el aislado obtenido de sangre de caballo es más virulento que el proveniente de un chigüire.
En este sentido y con aislados obtenidos de caballos, burros y chigüires de los estados Guárico y Apure, se encontró que un aislado de caballo (USR) es extremadamente virulento y mata la población de ratones NMRI infectados a los cuatro días; el otro aislado de caballo (Mantecal) y los dos aislados de chigüire (Cedral y el Frio) son medianamente virulentos aunque con elevada patogenicidad, pues los ratones mueren entre los días 20 y 24 post inoculación. Los dos aislados de burros (Trino y 323), tienen una parasitemia con comportamiento ondulatorio calificándose como muy suaves en cuanto a su virulencia, como se aprecia en los períodos de prepatencia y niveles de parasitemia alcanzados que se muestran de la figura 5 (Perrone, 2003 y manuscrito en preparación).

Figura 5. Niveles y desarrollo de las parasitemias en sangre de ratones de la cepa NMRI infectados con seis diferentes aislados de T. evansi provenientes de tres distintos hospederos de Guárico y Apure.
Caballo: USR y Mantecal; Chigüire: Cedral y El Frio; Burro: Trino y 323.
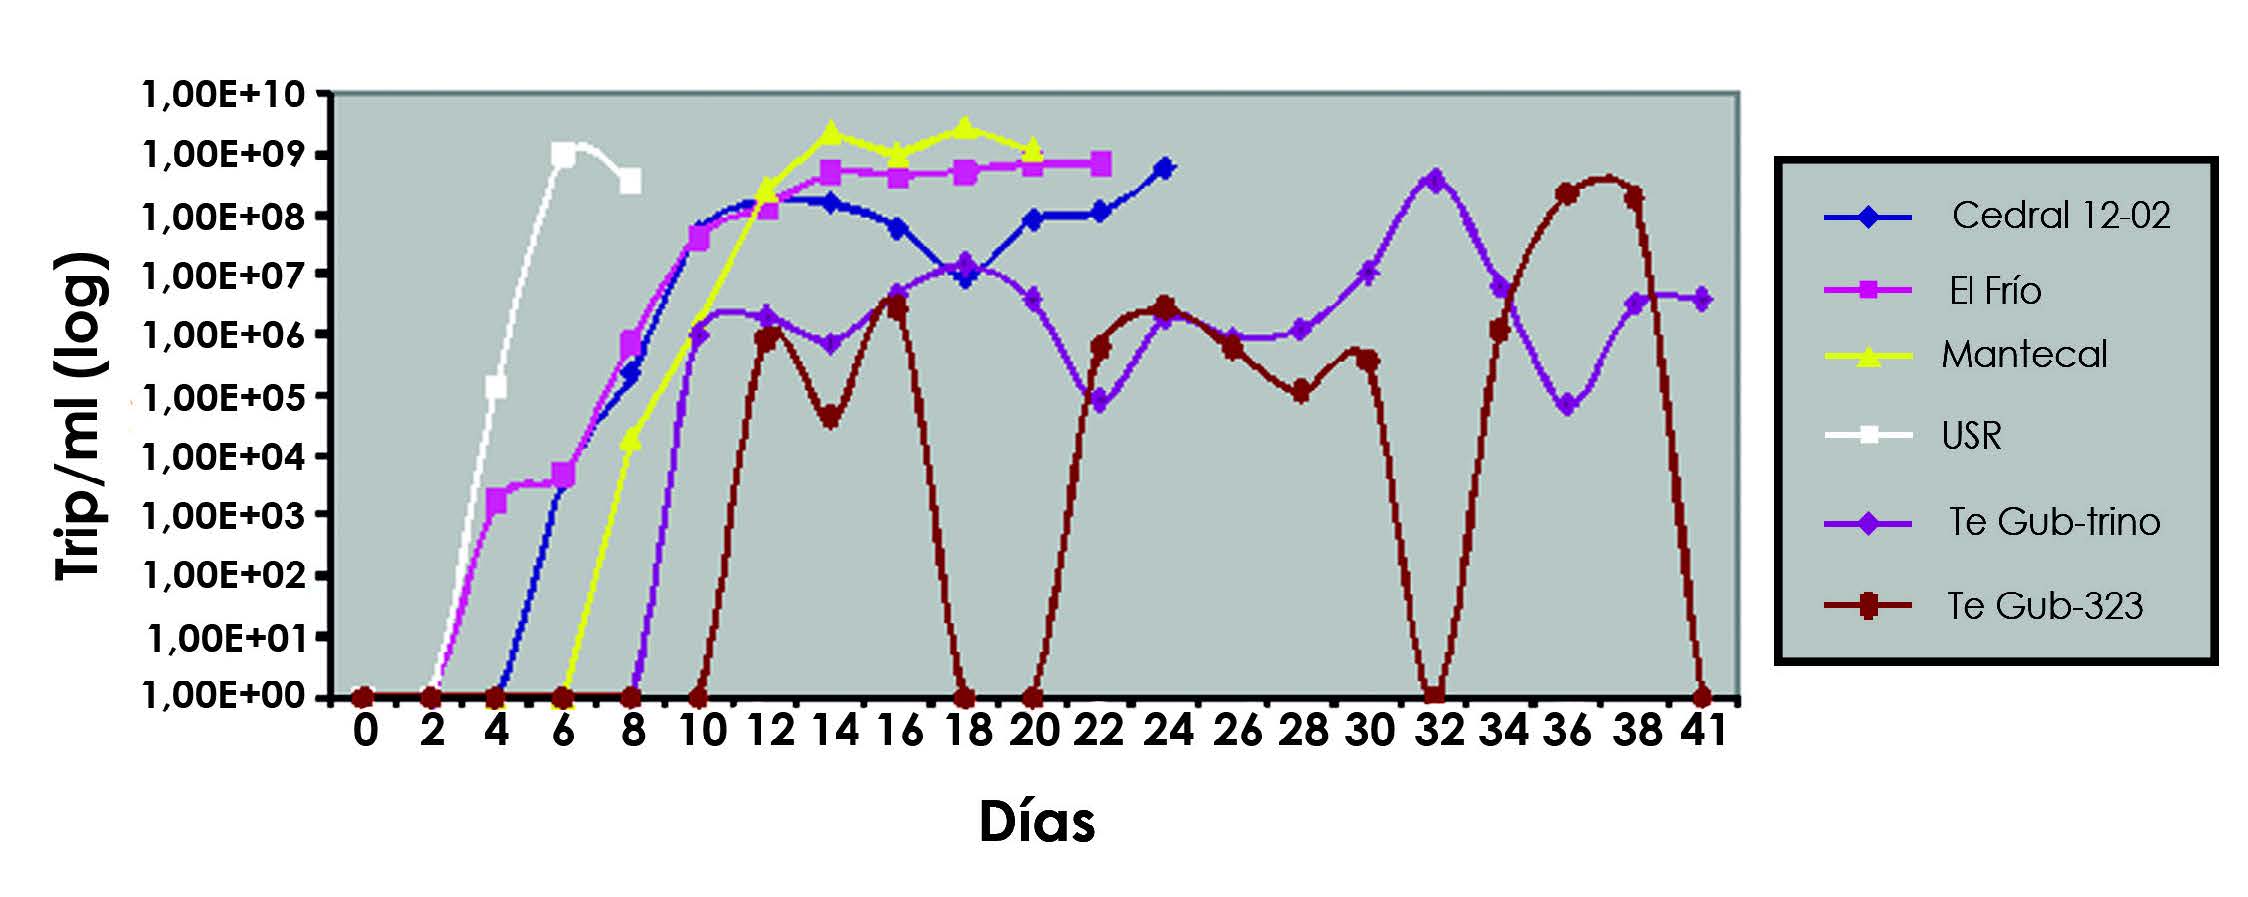
 Figura 6. Niveles del hematocrito en ratones infectados con diferentes aislados de T. evansi provenientes de tres distintos hospederos de Guárico y Apure.
Caballo: USR y Mantecal; Chigüire: Cedral y El Frio; Burro: Trino y 323. Control: no infectado.
 Figura 6. Niveles del hematocrito en ratones infectados con diferentes aislados de T. evansi provenientes de tres distintos hospederos de Guárico y Apure.
Tejero y col. han analizado ultraestructuralmente el daño causado por uno de los aislados venezolanos de T. Evansi de burro (Trino) en células hepáticas (2009a), en células renales (2009b), en el músculo cardíaco y su microvasculatura (2010) y en la glándula adrenal (2011) en el modelo ratón. En el hígado se encontraron cambios en las dimensiones de las mitocondrias y de los granos lipídicos, así como en las organelas de los hepatocitos. Se detectaron tripanosomas en las sinusoides hepáticas junto a los gránulos lipídicos, lo cual sugiere que el hígado es una órgano críptico blanco para la sobrevivencia del T. evansi dentro del hospedador (Tejero y col., 2009a). El riñón de ratones infectados con este mismo aislado de T. evansi también es un órgano afectado en la tripanosomosis. Se observa un incremento en el grosor de la membrana basal de los túbulos contorneados proximales, cambios en la colocación y agrupamiento de las mitocondrias y un deterioro epitelial. A partir del día 9 post-infección se detectan tripanosomas en la circulación renal, lo cual contribuye al deterioro renal con debilitamiento de la función tubular acelerando el proceso nefrítico que conduce a una falla renal aguda (Tejero, 2009b).
En las mitocondrias de las fibras cardíacas se observa un daño con una reducción del número de mitocondrias por célula y una disminución en sus dimensiones y en el número de crestas mitocondriales. También se evidencia una destrucción miofibrilar con pérdida y atrofia de microfilamentos, con presencia de parásitos en el lumen del sistema capilar cardíaco, pero no se observaron tripanosomas intra endoteliales ni intra células cardíacas. Este daño podría ser a su vez potenciado a través de mecanismos inflamatorios y autoinmunes, todo ello resultando en la muerte del animal hospedero a la que se une la falla hepática y renal (Tejero y col., 2010).
En caballos infectados con T. evansi, García (1988) encontró también alteraciones macroscópicas como hepatomegalia, esplenomegalia, adenomegalia, aumento del tamaño del corazón y riñones tumefactos. El estudio histopatológico de estos caballos reveló alteraciones como edema interfibrilar y degeneración de la fibra miocárdica, congestión y degeneración grasa hepática y glomérulonefritis proliferativa. Estos daños demuestran la patogenicidad de este parásito y la susceptibilidad de los equinos a desarrollar la tripanosomosis de manera similar a la especie ratón.
Desde el punto de vista inmunológico, los tripanosomas de origen africano han desarrollado una singular estrategia para evadir la respuesta inmune del hospedador denominada “variación antigénica”, en la cual está involucrada una proteína denominada glicoproteína variable de superficie (VSG). La variación antigénica está caracterizada por la aparición de un número de poblaciones de tripanosomas antigénicamente diferentes denominados “tipos de variantes antigénicos” (VATs). La aparición de los distintos VATs es la causa de la parasitemia ondulante del mamífero infectado como se mostró en la Figura 1. Las ondas de parasitemia en la sangre son generadas por la rápida multiplicación de los parásitos, hasta que el sistema inmune produce suficientes anticuerpos circulantes para lisar la mayoría de los tripanosomas.
Sin embargo, algunos parásitos sobreviven debido a que durante la fase de multiplicación han cambiado la expresión de un diferente tipo antigénico el cual no es reconocido por los anticuerpos circulantes (Vickerman, 1989). Esta pequeña población es la progenitora del siguiente pico de parasitemia. Los VATs originados durante la infección temprana se denominan VATs predominantes y en cada onda de parasitemia una población predominante se denomina homotipo o serotipo principal, mientras que las poblaciones menores se denominan heterotipos. Los heterotipos aparecen antes que los anticuerpos contra la población homotípica puedan ser detectados. Cada variable antigénica heterotípica puede convertirse en una población homotípica en las subsecuentes ondas de parasitemia (Vickerman, 1989; Perrone, 1992).
Sin embargo, los anticuerpos contra los antígenos del tripanosoma generados por el hospedero permiten el desarrollo y utilización de métodos de diagnóstico inmunológicos como el ELISA que, a su vez, puede ser usado para estimar la prevalencia de la enfermedad en distintas regiones del país. Por ejemplo la seroprevalencia entre 93 caballos del Estado Apure fue del 81,7%, mientras que equinos del Estado Miranda fue del 42,9%, y en caballos de la región Capital no se encontraron animales seropositivos (Reyna-Bello y col., 1998). En un estudio más reciente en caballos criollos del Estado Apure con este mismo ensayo se reporta una seroprevalencia del 26.3% (Forlano y col., 2011). Una poderosa herramienta para el diagnóstico del T. evansi lo constituye la técnica de la reacción en cadena de la polimerasa (PCR) que detecta el ADN del parásito, siendo particularmente útil en los períodos prepatente y crónico de la enfermedad, en los cuales el número de parásitos en sangre es relativamente bajo y difícil de detectar por los métodos convencionales (Fernández y col., 2009).
Trypanosoma equiperdum, causante de la durina, también está presente en Venezuela, pero con muy escasos reportes sobre él. Morfológica, bioquímica e inmunológicamente T. Equiperdum es indistinguible de T. evansi, siendo un microorganismo unicelular, monomórfico con una longitud de unos 25 micras con núcleo, membrana ondulante y quinetoplasto. Rivas Larralde diagnosticó clínicamente el primer caso de durina en Venezuela en 1939, aunque su presencia en sangre es siempre difícil de demostrar. Al inicio de la enfermedad en el caballo aparecen edemas, inicialmente en el prepucio y luego en la región testicular y abdominal inferior, todo acompañado por un proceso inflamatorio. En la yegua los labios vulvares se edematizan con la mucosa inflamada. Aparecen manchas rojizas que pueden romperse y formar cicatrices.
Al mes o dos de la infección se presentan manchas cutáneas que aparecen y desaparecen rápidamente. Se presentan signos de emaciación y el animal pasa mucho tiempo tumbado con dificultad para levantarse. En la última etapa de la enfermedad las mucosas palidecen por una intensa anemia con un cuadro de atrofia de las extremidades posteriores. También hay parálisis del nervio facial y de los labios. En las yeguas se pueden presentar abortos. La enfermedad presenta un desarrollo crónico que conduce a la muerte de animal entre 10 y 24 meses. (Diaz Ungria, 1960). Sin embargo después de 100 años de investigación en el mundo sobre este elusivo tripanosoma, muy poco se sabe sobre él y no hay un claro posicionamiento del T. equiperdum en el grupo de los Trypanosomatidios. Incluso una nueva hipótesis ha surgido de que T. equiperdum no existe como una especie separada, pues serológica y molecularmente está junto a T. evansi (Claes y col., 2005).
Con el fin de explorar la diversidad y riqueza biológica de los aislados venezolanos de Trypanosoma evansi, se hizo un estudio donde se compararon, mediante la técnica de biología molecular conocida como RAPD por sus iniciales en inglés “Random amplification polymorphic DNA”, nueve aislados de tripanosomas que inicialmente se presumían como T. evansi. Ello resultó en un dendograma de coeficientes de similitud que se expone en la figura 7. Se puede observar que dos aislados de caballo, TeAp-N/D (TEVA) y TeGu-N/D1, se encuentran juntos pero separados del resto de los aislados estudiados, sugiriendo que ellos podrían constituir un grupo genéticamente distinto (Perrone 2003; Perrone y col., 2009).
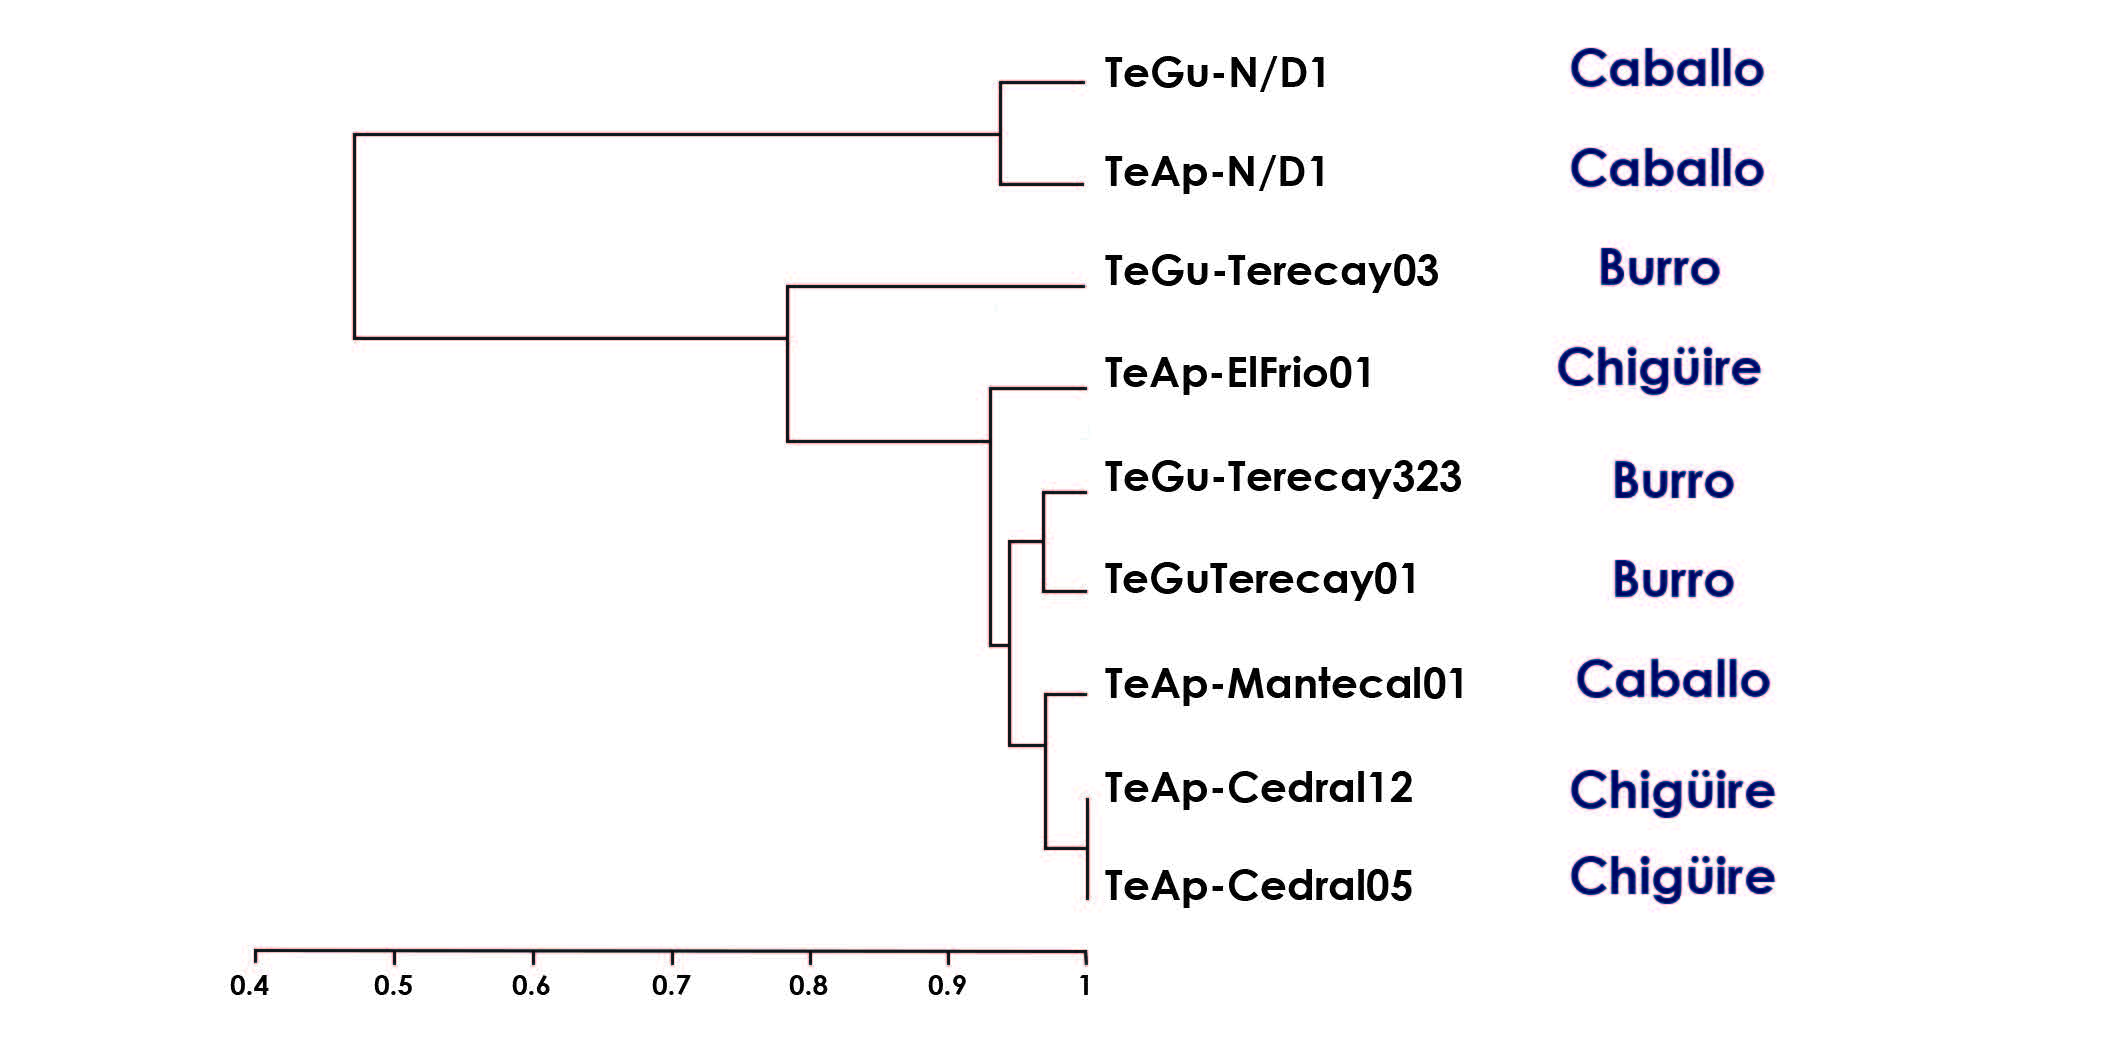
Figura 7. Análisis de cercanía de siete aislados venezolanos de supuestos T. evansi basado en la técnica de RAPD.
En Venezuela los caballos son indispensables para la cría extensiva de la ganadería bovina (Moreno y col., 2013), pero al mismo tiempo la tripanosomiasis o tripanosomosis equina es causante de una elevada mortalidad de ellos desde los primeros reportes de Rangel (1905). Por esto se hace necesario más y mejores investigaciones que permitan un mayor conocimiento de estos tripanosomas, su transmisión y diagnóstico, así como tratamientos efectivos de esta enfermedad.
La Salud de los nobles equinos, es un reto que hay que asumir, de lo contrario terminaremos como lo expresa el artista en su obra representada por la siguiente figura.
Visión artística de como terminaremos sino atendemos los problemas de salud de los nobles equinos.
Bibliografía
- Arcay L, Diaz Mila C y Ojasti J. (1980). Comportamineto de una cepa de Trypanosoma venezulense ( evansi) aislada de Hydrochoerus hydrochaeris en animales de laboratorio. Acta Biol Venez., 10(4):39, 1-418.
- Arias J. F., García F., Rivera M., López R. (1997) “Trypanosomaevansi in capybarafrom Venezuela”. Journal of Wildlife Disease.33:359-361.
- Fase-Fowler F. Gibson W. (1987) “Kinetoplast DNA of Trypanosoma evansi”.Molecular and BiochemicalParasitology. 23:31-38.
- Canelón, J. y Meléndez, R. (2003). Posible origen del Trypansomoa evansi en Venezuela. Veterinara Trop. 28(2):155-167.
- Claes, F., Büscher, P., Touratier, L y Goddeeris, B.M. (2005). Trypanosoma equipedum: master of disguise or historical mistake. Trends in Parasitol. 23(7):316-321
- Diaz Ungría, C. (1960). Trypansomas de los mamiferos domésticos. In: Parasitologia Venezolana Vol 1. p 291. Soc. CienciasNaturales la Salle, editr.
- Fernández, D., González, B., Eleizalde, M., González, E., Perrone, T. y Mendoza, M.(2009) Trypanosoma evansi: a comparison of PCR and parasitological diagnostic in experimental infected mice. Parasitol 121:1-7
- Forlano, M., Melendez, R., y Canelón, J.L. (2011). Seropositividad a Trypansoma evansi en caballos criolos infectados naturalmente en tres hatos del Estado Apure. Revista Científica FCV-LUZ XXI(2):131-136
- García F. (1988) “Infección experimental con Trypanosoma evansi” ( venezuelense).
- Aspectos patológicos y antigénicos”. Trabajo Especial de Grado de Maestría en Ciencias Biológicas. Universidad Simón Bolívar. 170 pp.
- García F., Rivera M., Ortega M., Suárez C. (2000) “Trypanosomiasis Equina Causada por Trypanosoma evansi en Tres Hatos Ganaderos del Estado Apure, Venezuela”. Revista de la Facultad de Ciencias Veterinarias-UCV. 41:91-100.
- Hoare, C. (1972). “The Trypanosomes of mammals”. A zoological monographs. Blackell Scientific Publication. Oxford.
- Mekata, H., Konnai, S., Mingala, C., Abes, N., Gutierrez, C., Dargantes, A., Witola, W., Inoue, N., Onuma, M., Murata, S y Ohashi, K. (2013). Isolation, cloning and pathologic analysis of Trypanosoma evansi field isolates. Parasitol. Res. 112:1513-1521
- Moreno, S.A., Concepción, J.L., Nava, M., and Molinari, J. (2013). Importance of the horse and financial impact of equine trypanosomiasis on cattle raising in Venezuela. Trp. Anim. Health Prod. On line DOI 10.1007/s11250-013-0412-5
- Perrone T.M. (1992) “Variación antigénica de un aislados venezolano de Trypanosoma evansi”. Trabajo Especial de Grado de Maestría en Ciencias Biológicas. Universidad Simón Bolívar. 114 pp
- Perrone, T. (2003) Tipificación de aislados geográficos de Trypanosoma evansi, Doctorado en Ciencias Biológicas, Universidad Simón Bolívar.
- Perrone, T., Garizzo, J., Roschman-González, A., Tejero, F, Escalante, A. y Aso, P.M. (2006). Susceptibility of different mouse strains to experimental infection with a Venezuelan isolate of Trypanosoma evansi. Protozoology. Research 16, 1-8.
- Perrone T. M., Gonzatti MI, Villamizar G, Escalante A, Aso PM. (2009). Molecular profiles of Venezuelan isolates of Trypanosoma sp. by random amplified polymorphic DNA method. Vet. Parasitol. 161:194-200.
- Queiros, A.O., Cabello, P.H., Jansen, A.M. (2000). Biologocal and biochemical characterization of isoaltes of Trypanosama evansi from Pantanal of Matogrosso-Brazil. Vet. Parasitol. 92:107-118
- Rangel R. (1905) “Nota Preliminar sobre la Peste Boba y Derrengadera de los equinos de los Llanos de Venezuela (Trypanosomiasis)”. Med. Caracas 12(14):105-113.
- Reverón I. (1992) “Tripanosomiasis en chigüires (Hydrochaerushydrochaeris) y su diagnóstico mediante el ensayo ELISA”: Trabajo Especial de Grado. Licenciatura en Biología. Universidad Simón Bolívar. 91 ppReyna-Bello A., García F.A., Rivera M., Sanso B., Aso P.M. (1998) “Enzyme-linked immunosorbent assay (ELISA) for detection of anti-Trypanosomaevansi equine antibodies”. Vet Parasitol. 80(2):149-157.
- Rivas Larralde, G. (1939). Un caso de durina en Venezuela, Rev. Med. Vet, y Paras. I(2-3-4):119-123
- Tejero, F., Brun, S., Roschman-González, A., Perrone, T. M., Aso, P.M., Velasco, E. and Finiol, H.J. (2009a). Trypanosoma evansi: Analysis of the ultraestructral change in hepatic cells during murine experimental infections. Acta Microscopica 18(1):28:32.
- Tejero, F., Brun, S., Roschman-González, Velasco, E., Aso, P.M., and Finol, H.J. (2009b).Ultraestructura renal en infecciones murinas experimentales con un aislado venezolano de Trypanosmaevansi. Revista del Instituto Nacional de Higiene “Rafael Rangel” 40(2):44-49.
- Tejero, F., Arias-Mota, L., Roschaman-Goinzalez, A., Aso, P.M. y Finol, J. (2010). Trypanosomaevansi: Ultraestructural cardiac muscle and cardiac microvaculature changes in experimental murine infections. Acta ScientiaeVeterinariae 38(3):279-285.
- Tejero, F., Rondón-De Vivo, C., Roschman-González, A., Aso, P.m. y Finol, H.J.(2011)Morfometríaultraestructural de la glándula adrenal en infecciones murinas experimentales por dos aislados venezolanos de Trypanosoma evansi. Revista del Instituto Nacional de Higiene Rafael Rangel. 42 (2): 60-74.
- Verdillo, J.C., Lazaro, J.V., Abes, N.S. y Mingala, C.N. (2012). Comparative virulence of three Trypanosomaevansi isolates from water buffaloes in the Philippines. Exp. Parasitol. 130:130-134.
- Vickerman K. (1989) Trypanosome sociology and antigenic variation.Parasitology. Suppl:S 37-47.
:


