

Pedro María Aso
La tripanosomosis es el término propuesto hace un tiempo por Kassai y col. (1988) para sustituir el de tripanosomiasis animal que se utiliza para referirse a un conjunto de enfermedades parasitarias causadas por protozoarios del género Trypanosoma, del grupo Salivaria de origen africano representados principalmente por Trypanosoma brucei brucei, T. congolense, T. vivax, T. evansi y T. equiperdum.
En África, la tripanosomosis animal causada por los tres primeros es popularmente conocida como “Nagana” y se extiende por casi 40 países ubicados entre los 14º de Norte, continuándose por debajo del Ecuador hasta los 29º de latitud Sur, en la zona Sub-Sahariana infestada con la mosca tse-tsé, perteneciente al género Glossina que la trasmite, afectando a bovinos, pequeños rumiantes, cochinos, caballos y perros. En dicho continente la tripanosomosis causada por T. evansi recibe el nombre de “Surra” afectando camellos, caballos, mulas, asnos, pequeños rumiantes, elefantes, perros y gatos pero trasmitida mecánicamente por Dípteros hematófagos. La causada por T. equiperdum recibe el nombre internacional de “Dourine” y afecta a caballos y asnos y no se trasmite por insectos vectores sino por coito (Namangala y Odongo, 2014).
Estudios filogenéticos basados en el RNA ribosomal indican que los tripanosomas salivares se separaron evolutivamente de los otros tripanosomas hace unos 300 millones de años y se convirtieron en parásitos intestinales de ciertos insectos que, con la aparición de las mosca tse-tsé hace 35 millones de años, son trasmitidos a los animales silvestres por estos insectos hematófagos.
Esta larga coexistencia hospedero-vector-parásito podría explicar la tolerancia de los animales silvestres a estos parásitos que los infectan pero no sufren la enfermedad, lo cual no es el caso de la mayoría de los animales domésticos, quienes solo han tenido 13.000 años de coexistencia para poder desarrollarla (Steverding, 2008).
En Venezuela, como en algunos otros países de Centro y Sur América, la tripanosomosis está también presente, afectando la salud animal de nuestra ganadería bovina, ovina, bufalina y a los equinos, causando significativa morbilidad y mortalidad. El T. vivax causa la conocida “Secadera”, “Huequera” o “Cacho hueco” en los bovinos (Figura 1) y en pequeños rumiantes, siendo refractaria en animales de laboratorio.

Figura 1. Animal con tripanosomosis bovina en una finca del estado Apure.
Foto F. García†
El T. evansi causa la “Derrengadera” y el T. equiperdum la “Durina” en equinos, mulas y asnos. (Díaz Ungria, 1960, Rivera, 1996). Las dos primeras trasmitidas mecánicamente por insectos hematófagos como Stomoxys y Tabanus y la última por contacto sexual. Tanto el T. evansi como el T. equiperdum se desarrollan al ser inoculados en ratas y ratones de laboratorio generando una infección aguda y la muerte del animal, constituyendo un modelo experimental que facilita la investigación de estas dos enfermedades. Esto no ha sido posible con el T. vivax.
La tripanosomosis bovina es causada por T. (Dutonella) vivax, protozoo descubierto por el doctor alemán Hans Ziemann en 1905, que vive y se multiplica extracelularmente en el torrente sanguíneo. La enfermedad tiene un período de incubación de 3 a 30 días caracterizada por fiebre, importantes cambios hematológicos como anemia, leucopenia y plaquetopenia con emaciación y progresivo debilitamiento causando la muerte del animal (Espinoza y col., 1992, Espinoza y Aso, 1992) (Fig. 2).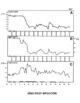
Figura 2. Variación de la hemoglobna (A), el hematocrito (B) y temperatura (C) de un bovino infectado con un aislado venezolano de T. vivax.
Barras inferiores representan los días con parásitos en sangre. (Espinoza y col., 1992).
Este proceso de infección se caracteriza por una fase aguda inicial con una alta parasitemia circulante, seguida por una fase crónica con niveles de parasitemias más bajos pero recurrentes. Es en esta segunda fase cuando la mayor respuesta inmune adaptativa ocurre (Murray y Dexter, 1988).
La enfermedad es señalada por primera vez en Venezuela por el doctor Enrique Tejera (1920), quién lo llama T. cazalboui. Su introducción en América está relacionada con una importación de bovinos cebú, en 1830, traídos desde Senegal a la Guyana Francesa y las islas de Guadalupe y Martinica (Toro, 1987).
Es un microorganismo monomórfico, fusiforme con una membrana ondulante poco desarrollada y estrecha con un flagelo libre con un núcleo central que contiene su ADN y una organela muy característica denominada kinetoplasto que les da el nombre de Kinetoplatidas (Figura 3). Recientemente por microscopia electrónica de barrido de cinco aislados venezolanos de T. vivax se reportó un tamaño entre 18 y 24 µm (Gómez y col. 2014).

Figura 3. Microfotografía de Trypanosoma vivax en sangre mediante microscopía electrónica de barrido.
Foto: A. Bretaña
Aunque en África la enfermedad tiene consecuencias dramáticas en los animales cebú (Bos indicus) su impacto es menor en ciertas razas de bovinos Bos taurus, los cuales son naturalmente tolerantes a la infección por tripanosomas (Berthier y col., 2008). Esto no parece ser el caso en nuestro país, donde los animales lecheros son tan susceptibles como los cebuinos. Este tema de la tripanotolerancia ha sido particularmente explotado en el continente africano aprovechando la existencia de razas locales de Bos taurus como N´Dama (Figura 4) y Baoulé que han desarrollado genéticamente una tolerancia a la infección y a sus efectos patológicos. Se trata que los bovinos tripanotolerantes tienen mayor capacidad para limitar pero no impedir- el desarrollo del parásito (parasitemia), así como presentar un menor grado de anemia.

Figura 4. Toro de la raza N´Dama africana con características de tripanotolerancia.
Foto: D. Berthier
Aunque este fenómeno no está del todo bien entendido y se desconocen los genes que pudieran estar involucrados con el desarrollo del conocimiento del genoma bovino, se hacen importantes investigaciones para caracterizar los genes y sus respectivas expresiones de RNA mensajeros–transcriptoma- que pudieran estar envueltos en el fenómeno de la tripanotolerancia (Berthier y col., 2008).
En Venezuela se han adelantado algunos estudios para evaluar si razas como la Senepol (Figura 5), pudieran tener algunos genes relacionados con la tripanotolerancia pues, aunque no se encontraron genes N´Dama en los ejemplares involucrados en la investigación, resulta una raza bien adaptada a las condiciones tropicales al poseer un locus para el gen de la termotolerancia (Flori y col., 2012). Además todos ellos fueron negativos a tripanosomas por métodos parasitológicos (Woo) y moleculares (PCR) aunque mostraron anticuerpos anti-tripanosoma (seropositivos) mediante ELISA (Torres, 2013).

Figura 5. Rebaño Senepol en finca del Edo Guárico con genes de termoregulación y negativos a Trypanosomas spp mediante PCR.
El grupo de tripanosomas salivares –T. vivax y T evansi incluídos- han desarrollado un sistema muy particular para defenderse y evadir la respuesta inmune del hospedador, que se conoce en la literatura mundial como variación antigénica, involucra la expresión de diferentes tipos de variables antigénicas denominadas por sus iniciales en inglés VATs. (Barry, 1997). Se ha demostrado que una glicoproteína denominada VSG (Variable Surface Glycoprotein) de 64 Kd de peso molecular -46 Kd para el T. vivax– recubre la superficie del tripanosoma y es la responsable de variar para confundir al sistema inmunológico del animal infectado (Gardiner y col., 1987).
Esta variación de la proteína VSG está dirigida por la continua expresión de genes que la codifican de un largo repertorio que posee el genoma de este protozoo y que se van expresando secuencialmente a lo largo de la infección, generando poblaciones de tripanosomas con VSG antigénicamente distintas, que limitan los mecanismos protectores mediados por los anticuerpos generados contra cada variante. Estas VSGs están codificadas por una familia multigénica y la variación antigénica se presenta cuando el tripanosoma cambia la expresión de un gen de las VSG a otro (Ashall, 1986).
Los anticuerpos producidos por el sistema inmune reconocen y permiten eliminar una primera población del parásito, pero inmediatamente surge una segunda con una VSG distinta que no es reconocida por estos anticuerpos circulantes que habían sido inducidos por la primera oleada de tripanosomas, por lo que el hospedador debe preparar otra nueva generación de anticuerpos contra la segunda población aparecida y así sucesivamente.
Este fenómeno explica la recurrencia de sucesivos máximos de parasitemias ondulantes (picos) acompañados de estados febriles también ondulantes característica de la tripanosomosis animal. En palabras sencillas los tripanosomas cambian sus proteínas de superficie y engañan al sistema inmune del hospedador. Este mecanismo de evasión de la respuesta inmunitaria hace difícil diseñar una estrategia de vacunación como mecanismo de protección para esta enfermedad.
Una de estas glicoproteínas variables de superficie (VSG) de 64 Kd fue purificada de un aislado venezolano TEVA1, considerado T. evansi (TeApN/D), la cual es reconocida por sueros de bovinos infectados con T. vivax indicando la presencia de una reacción cruzada entre estos dos tripanosomas (Uzcanga, y col., 2002). Esta reacción cruzada permite el serodiagnóstico de estas dos enfermedades, utilizando como antígeno extractos de T. evansi mientras se logran antígenos más específicos para usar en inmunoensayos de diagnóstico como ELISA (Reyna-Bello y col., 1998, Espinoza y col., 1999).
Un aspecto significativo en la tripanosomosis animal tiene que ver con el estudio de los factores responsables de los mecanismos de virulencia y patogenicidad presentes en estas hemoparasitosis, cuyo conocimiento podría ser una vía para el control de la enfermedad. Desde hace tiempo se ha observado que durante la fase aguda de la infección por T. vivax se presenta un fenómeno de fagocitosis de los eritrocitos por macrófagos, mientras que en la fase crónica predomina una disminución de los mecanismos eritropoyéticos.
Entre los posibles factores de esta eritrofagocitosis se incluye la acción de enzimas como proteinasas, fosfolipasas, neuraminidadas y sialidasas tripanosomales. Particular atención se ha puesto en la acción de las neuraminidasas y sialidasas que exponen moléculas de galactosa de la superficie del glóbulo rojo que luego facilitan el reconocimiento de los eritrocitos por las células fagocíticas. Las sialidasas de los tripanosomas son capaces de hidrolizar el ácido siálico de la membrana de los eritrocitos facilitado su fagocitosis por células macrofágicas (Figura 6) (Guegan y col., 2013).

Figura 6. Estructura del ácido N-acetilneuramínico también conocido como ácido siálico.
Su remoción de la superficie del eritrocito promueve la remoción de las células rojas del organismo.
Estos autores han estudiado el proceso de la fagocitosis de eritrocitos en la fase aguda de la enfermedad en un modelo murino como principal causa de la anemia durante la infección por T. vivax y lo explican en cuatro etapas: 1) Incremento de parásitos correspondientes a la primera oleada de parasitemia con una leve anemia, 2) Disminución de esta primera ola de parasitemia con presencia de anemia más severa, 3) desaparición de los parásitos en sangre asociados con una leve recuperación del hematocrito y 4) alto nivel de parásitos en sangre asociada con la segunda ola de parasitemia, acompañada de una fuerte anemia.
Los autores muestran evidencias experimentales que la eritrofagocitosis es la responsable de la primera fuerte disminución del hematocrito en la fase aguda de la infección y que, son las enzimas sialidasas liberadas por los tripanosomas -al inicio de la infección- las que causan la degradación del ácido siálico (desialización) de la superficie del glóbulo rojo, provocando su fagocitosis y originando así el proceso anémico. También sugieren que esta actividad de las sialidasas del tripanosoma es un factor esencial en la virulencia y por lo tanto podrían ser blancos de posibles nuevos agentes terapéuticos contra la enfermedad.
La prevalencia de la tripanosomosis bovina en nuestro país ha sido ampliamente reportada por distintos autores. El trabajo pionero de Toro Benítez y col. (1980) mediante hemaglutinación pasiva y aglutinación capilar en fincas de diferentes regiones reportan una prevalencia promedio de 25,5%. Posteriormente se reportan seroprevalencias en ocho regiones venezolanas, siendo la más alta en el estado Apure con un 39% y la más baja en la zona oriental con 3,4% (Toro, 1990) y mediante ELISA en el estado Bolívar, con un valor de 30% (Espinoza y col.,1999).
Suárez y col. (2009), indican una seroprevalencia de 33% en el estado Lara. Tamasaukas y col (2010), observaron una prevalencia mediante inmunofluorescencia indirecta (Figura 7), con promedio del 60% en fincas del estado Guárico (56,9% en época lluviosa y 45,7% en época seca), siendo mayor en hembras adultas (37,1%). En el año 2008 García y col. reportaron un brote de tripanosomosis en la zona de Temblador en el estado Monagas de 50% de animales seropositivos por ELISA. Información adicional sobre la tripanosomosis en lationoamérica se presenta por Gonzatti y col. (2014).

Figura 7. Microfotografía con luz fluorescente en un Trypanosoma vivax en un ensayo de inmunofluorescencia frente a un suero bovino infectado.
Aunque clásicamente se ha asociado a presencia de T. vivax en bovinos y pequeños rumiantes en Venezuela, observaciones de campo -aún no publicadas- parecen indicar que es posible encontrar bovinos positivos a T. evansi en ensayos de diagnóstico molecular (PCR). Más aún, en ensayos de laboratorio se ha comprobado que becerros infectados experimentalmente con T. evansi, desarrollan una parasitemia con la consecuente disminución del hematocrito en el animal. Esto nos obliga como país a aumentar nuestros estudios y la vigilancia epidemiológica con métodos de diagnóstico buenos, actualizados y compartidos frente a brotes de la tripanosomosis bovina, para su control y eventual erradicación.
:
:
Bibliografía
- Ashall, F. (1986). Molecular basis of antigenic variation in african trypanosomes. BioEssays. 4:201-203.
- Barry J.D. (1997) The relative significance of mechanism of antigenic variation in African Trypanosomes. Parasitol. Today. 13:212-218.
- Berthier, D. Chantal I, Thevenon S, Sakande H, Maillard JC, Bengaly Z, Piquemal D, Marti J, Cuny G. (2008). Study of bovine trypanotolerance by whole transcripotome analysis. Animal biodiversity and Emerging Disease. N.Y. Acad. Sci. 1149:71-76
- Diaz Ungría, C. (1960). Tripanosomas de los mamíferos domésticos en Venezuela. En: Parasitología Venezolana, Soc. Ciencias Naturales La Salle. Editorial Sucre. Pp. 280-310.
- Espinoza, E.; Aso, P.M. y Camacaro, I. (1992). Valores hematológicos de bovinos infectados experimentalmente con un aislado venezolano de Trypanosoma vivax. Parte I, Eritrocitos. Revista de Salud Animal. 14:31-40,
- Espinoza, E. y Aso, P.M. (1992). Valores hematológicos de bovinos infectados experimentalmente con un asilado venezolano de Trypanosoma vivax. Parte II, Leucocitos. Revista de Salud Animal, 14:41-49.
- Espinoza, E.; González, N.; Perrone, T.; Aso, P.M.; Hidalgo, L. y Barasarte, L. (1999). Aplicación del ensayo inmunoenzimático (ELISA-Ac/T. evansi) para la detección de anticuerpos anti Trypanosoma vivax en el Estado Bolívar. Veterinaria Trop. 24(1):47-53.
- Flori, ; Gonzatti, M.I.; Thevenon, S.; Chantal, I.; Pinto, J.; Berthier, D.; Aso, P.M. y Gautier, M. (2012). A Quasi-Exclusive European Ancestry in the Senepol Tropical Cattle Breed Highlights the Importance of the slick Locus in Tropical Adaptation. PLos ONE 7(5)e36133:1-10.
- García, F.; Alfaro, E.; Reyna, A. y col. (2008) Evaluación de la eficacia de un producto a base de cloruro de isometamidium y clorhidrato de oxitetraciclina en un rebaño de ceba del estado Monagas naturalmente infectado con Trypanosoma vivax y Anaplasma marginale. Venezuela 23:34-43.
- Gardiner, P.; Pearson, T.; Clarke, W. y Mutharia, M. (1987). Identification and isolation of a variant surface glycoprotein from Trypanosoma vivax. Science. 235:774-777.
- Gómez, E.; Boada, A.; Bretaña, A.; Contreras, M.; García, F. y Reyna-Bello, A. (2014). Morfometría Comparativa de Cinco Aislados Venezolanos de Trypanosoma vivax. Rev. Fac. Cs. Vets. 55(1):25-33.
- Gonzatti, M.; González, B.; Aso, P.M. y Reyna-Bello, A. (2014). Trypanosoma (Deutonella) vivax and Trypanosomosis en Latin America: Secadera/Huequera/Cacho hueco. En Trypanosomas and Trypanosomiasis. Magez y Radwanska Editores, capítulo 11,p 261-285.
- Guegan, F.; Plazolles, N.; Baltz, T. y Coustou, V. (2013). Erytrophagocytosis of desialylated red blood cells is responsible for anaemia during vivax infection. Cell Microbiol. 15(8):1285-1303.
- Kassai T, M. Cordero Del Campillo, J. Euzeby, S. Gaafar, Th. Hiepe y C.A. Himonas. (1988). Standardized Nomenclature of Animal Parasitic Diseases Veterinary Parasitology. 29: 299-326.
- Murray, M y Dexter, T,M, (1988) Anaemia in bovine African A review. Acta Tropica 45, 389-432.
- Namangala, B y Odongo, S. (2014). Animal African trypansosomosi in Sub-Saharan African and beyond African borders. En: Trypanosoms and tripanosomiasis. 239-260. Magez and Radwanska Editors. Springer.
- Reyna-Bello, A.; García, F.; Rivera, M.; Sansó, B. y Aso, P.M. (1998). Enzyme linked inmunosorbent assay (ELISA) for detection of anti-Trypanosoma evansi equine antibodies. Veterinary Parasitology 71, 251-262.
- Rivera, M. (1996). Hemoparasitosis bovina. Colección Estudios, Universidad Central de Venezuela.
- Suárez, C.; García, F.; Román, D y Coronado, Alfredo; Perrone, Trina; Reyna, Armando; Parra, Nereida (2009). Factores de riesgo asociados a la tripanosomosis bovina en explotaciones ganaderas de Venezuela. Zootecnia Tropical 27:363-372.
- Steverding, D. (2008). The history of african trypanosomiasis. Parasite and Vectors: 1:3.
- Tejera, E. (1920). Trypanosomiasis animales au Venezuela. Bull. Soc. Path. Exotique 13: 297-305.
- Tamasaukas, R.; Agudo, L.; Silva, A.; Florio, J.; Vintimilla, M. y Rivera, S. (2010). Hemoparasitosis en ganadería doble propósito venezolana, diagnóstico y control: una revisión. Agronomía Mesoamericana, N° 21, pp. 367-381.
- Toro, M.; León, E.; López, R.; García, J. y Ruiz, A. (1980). Resultados de un muestreo sobre tripanosomiasis bovina mediante técnicas serológicas. Veterinaria Tropical. Vol. 5, pp. 43-50.
- Toro, M. (1987). Tripanosomiasis animal: Diagnóstico y Control. FONAIAP DIVULGA N° 25 Julio- Septiembre. Disponible en:http://www.cengov.ve/bdigital/fdivul/fd25/texto/tripanosomiasis.htm
- Toro, M. (1990). Seroepidemiología de las hemoparasitosis en Venezuela. En Hemoparásitos: Biología y Diagnóstico. Giardina & Garcia, Editores. Cuadernos, Universidad Simón Bolívar.
- Torres, C. (2013) Prevalencia de tripanosomosis y anaplasmosis en ganado Senepol. Tesis en Biología, Universidad Simón Bolívar.
- Uzcanga, G.; Mendoza, M.; Aso, P.M y Bubis, J. (2002). Purification of a 64 Kd antigen from Trypanosoma evansi that exhibits cross-reactivity with Trypanosoma vivax. Parasitology. 124:287-299.
:
:


1 comentario
Excelente trabajo, mis felicitaciones al autor.